做代谢组学定量,方法很直接:称好已知量的同位素标记标准品,加进样品里,质谱上一轻一重两个峰,比值就是浓度。但做蛋白质组学定量时,这个方法行不通——你不能在细胞裂解后"补标记"。因为蛋白质是细胞活着的时候合成的,裂解后加标记无法区分"原本就在细胞里的蛋白质"和"你后来加进去的标记物"。SILAC(稳定同位素氨基酸细胞培养标记)的解法看起来很"笨":让细胞自己在培养过程中把标记氨基酸"吃"进蛋白质里。但这个"笨办法"至今是细胞系定量蛋白质组学领域准确度最高的方法之一。
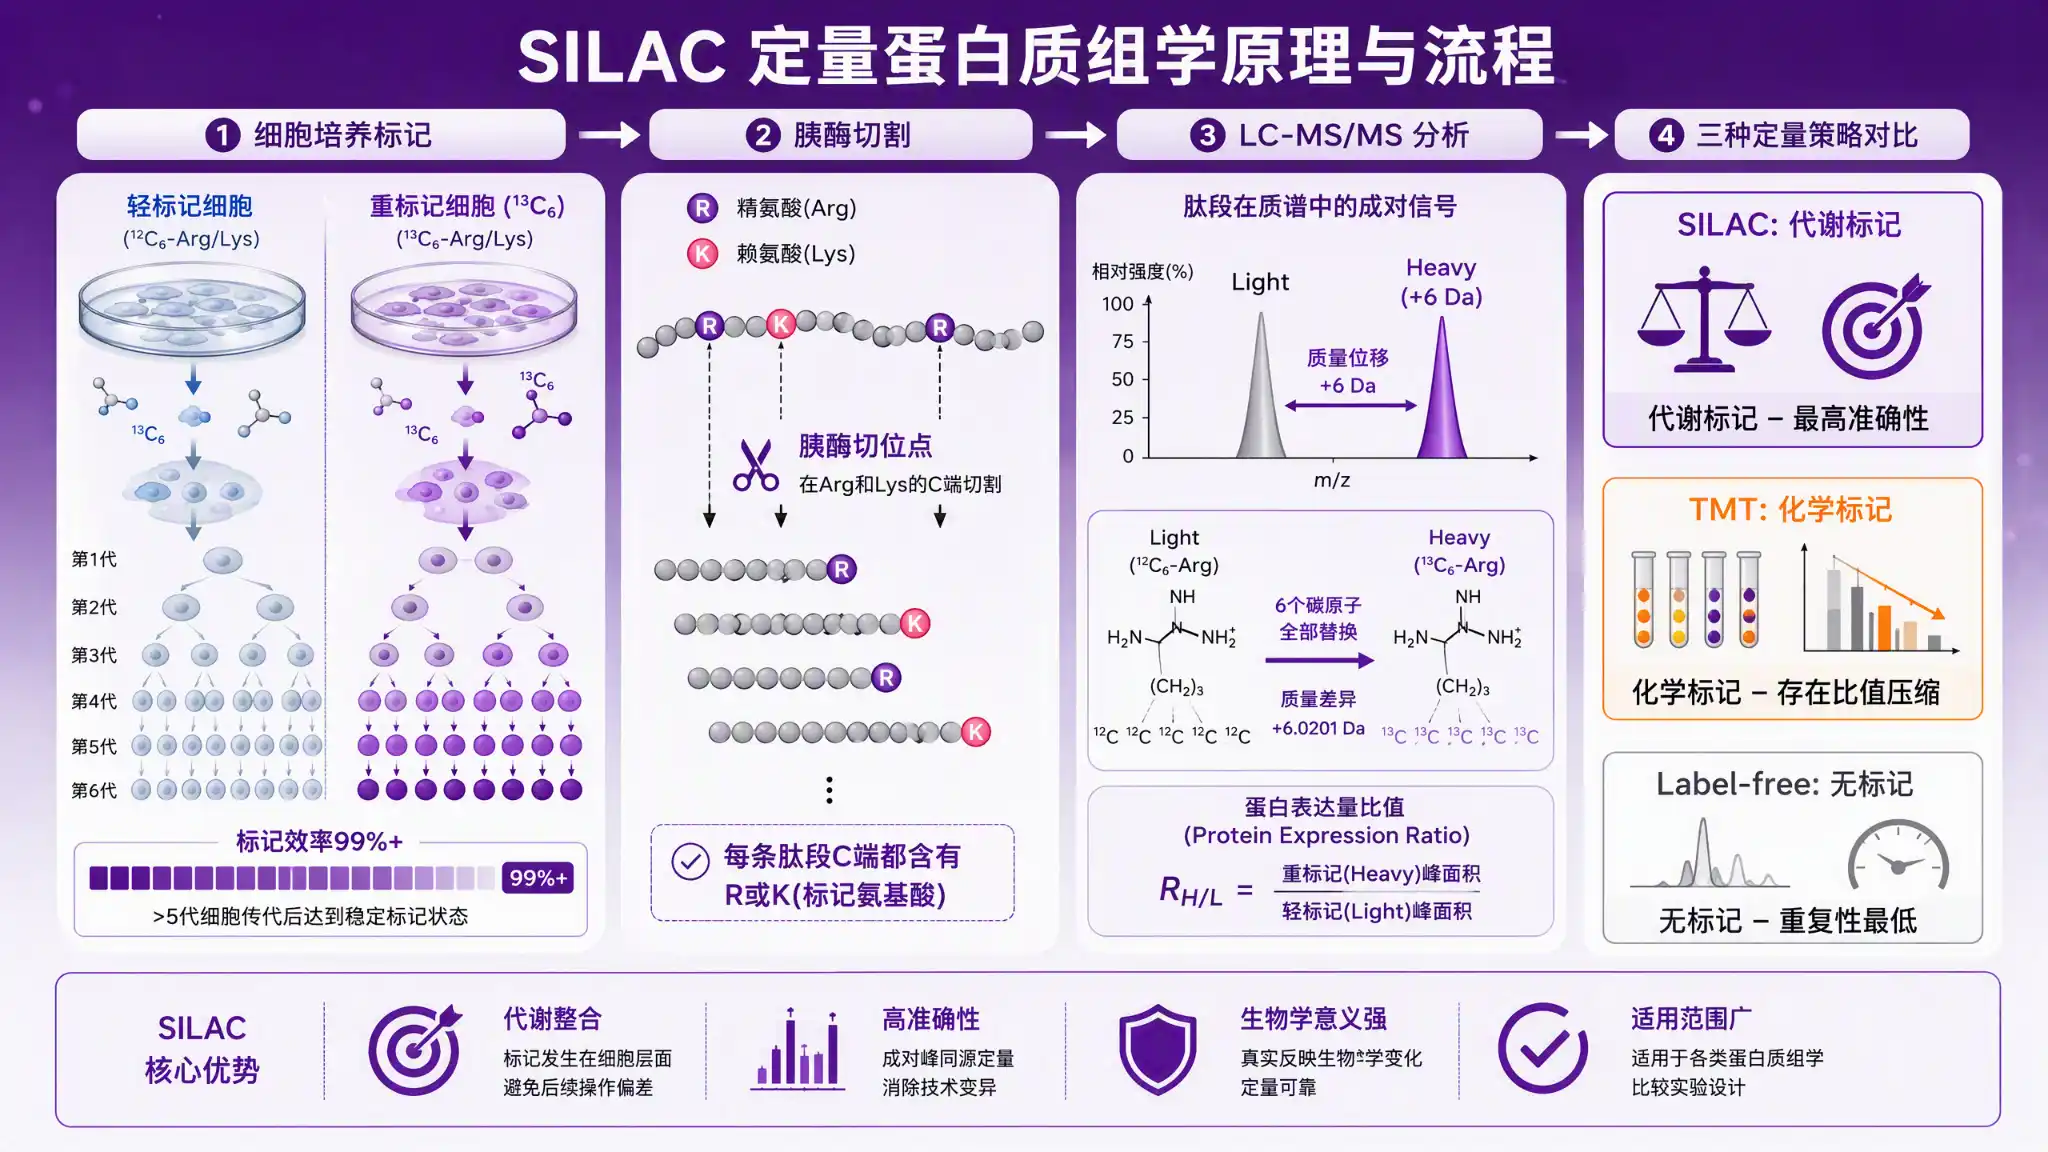
代谢物是小分子,结构稳定,裂解后加同位素标记标准品就能做定量——因为标记标准品和待测代谢物在质谱上只差几个道尔顿,一轻一重两个峰直接比。但蛋白质不一样:蛋白质是细胞在生长、分裂、应激时动态合成的,你没法在裂解后"补标记"——因为轻重蛋白质必须在肽段层面区分,而裂解后加的标记物不会进入已经合成的蛋白质序列里。
这个困境催生了三条定量路线,各有各的解法:
SILAC(代谢标记)——让细胞自己"吃"标记
把¹³C₆-L-精氨酸和¹³C₆-L-赖氨酸加入培养基,替换普通氨基酸。细胞在传代过程中把标记氨基酸"吃"进新合成的蛋白质里,经过 5-6 代传代后,全蛋白质组的标记效率达到 99% 以上。裂解、酶切、质谱分析时,轻重样品可以等量混合后一起跑——因为标记在肽段序列里,不会丢失,也不会引入化学衍生化偏差[1]。
代价:需要营养缺陷型细胞株(必须不能自己合成该氨基酸),培养周期长(至少 5-6 代),不是所有细胞株都适用。
TMT/iTRAQ(化学标记)——裂解后贴标签
不需要特殊细胞株,蛋白质提取后用 TMT(串联质量标签)或 iTRAQ 试剂对肽段做化学衍生化标记,不同样品贴不同质量的标签,质谱上通过报告离子定量。优点是适用范围广(任何样品类型都能用,包括临床组织),通量高(TMTpro 最多 18 标)。缺点是化学衍生化引入偏差,且报告离子在 MS/MS 中存在共隔离问题——不同肽段的报告离子信号互相干扰,导致定量比值被压缩[2]。
代价:化学标记引入变异,比值压缩需要后续校正,试剂成本高。
Label-free(无标记定量)最简单:不标记,不同样品分别跑质谱,直接比信号强度。但重复性是三条路线中最差的——高度依赖仪器稳定性和色谱重复性,如果质谱在跑两个样品之间漂移了,定量结果就不可靠,一般需要更多技术重复来弥补。
三条路线的核心权衡可以用一句话概括:SILAC 标记最彻底但最麻烦,TMT 最灵活但引入偏差,Label-free 最简单但重复性最差。SILAC 之所以在细胞系定量蛋白质组学领域被视为准确度最高的方法之一,关键在于标记是细胞自己完成的——同位素天然嵌在蛋白质序列里,没有化学衍生化步骤引入的变异,轻重样品在制备流程中的损耗完全一致(因为从裂解开始就混合在一起跑)。这种"前置投入换后端准确"的设计逻辑,是 SILAC 的核心价值。
三条路线的对比基于蛋白质组学方法学综述[1,2]。SILAC 的高准确度地位来源于其标记天然嵌入蛋白质序列、无化学衍生化偏差的特性。TMT 的比值压缩问题在多篇方法学文献中有报道,可通过 SPS(同步前体离子扫描)部分缓解。Label-free 的重复性取决于仪器稳定性,一般需要≥3 次技术重复。
确定了走 SILAC 路线,下一个关键决策是:标记哪种氨基酸?这个选择不是随便挑的——选错了,大部分肽段在质谱上没有标记,定量覆盖率暴跌。
SILAC 最常用的组合是¹³C₆-L-精氨酸(Arg)+ ¹³C₆-L-赖氨酸(Lys)。原因不在氨基酸本身,而在下游的酶切步骤:质谱定量在肽段层面进行,需要把蛋白质酶切成肽段,最常用的酶是胰蛋白酶(trypsin)。胰蛋白酶的切割特异性是在精氨酸和赖氨酸的 C 端切断肽键——这意味着,除了蛋白质最末端的 C 端肽段外,每个胰酶肽段的 C 端最后一个氨基酸都是 Arg 或 Lys。
如果标记的是 Arg 和 Lys,那么每个胰酶肽段(C 端肽段除外)都至少带一个标记氨基酸——质谱上一定能看到轻重位移。如果标记的是其他氨基酸(比如亮氨酸),那么只有含亮氨酸的肽段才有标记——大量不含亮氨酸的肽段在轻重样品之间没有位移,无法定量。覆盖率显著低于 Arg+Lys 组合。
Arg+Lys 组合是 SILAC 的标准方案,覆盖率约 90%+。实际覆盖率取决于蛋白质序列中 Arg/Lys 的分布。质量位移 6 Da 是 ¹³C₆ 标记的结果(6 个 ¹²C 替换为 ¹³C)。除 C 端肽段外,每个胰酶肽段至少含一个 Arg 或 Lys,因此几乎都能被定量。
为什么用 ¹³C₆ 而不是氘代(²H)标记?¹³C 标记的肽段在色谱保留时间上与轻标记肽段几乎完全一致——因为 ¹³C 和 ¹²C 的化学性质几乎相同。氘代标记则可能导致保留时间偏移(C-D 键的疏水性略高于 C-H 键),轻重肽段在不同时间出峰,引入定量偏差。所以 SILAC 首选 ¹³C 标记,氘代标记一般只在 ¹³C 标记不可行时作为替代方案[1]。
还有一层考量:选 Arg + Lys 双标而不是单标,是因为有些蛋白质富含 Arg 但少 Lys,有些富含 Lys 但少 Arg——双标可以确保不管蛋白质的氨基酸组成如何,每个胰酶肽段都至少带一个标记。如果只标 Lys,富含 Arg 少 Lys 的蛋白质产生的肽段中,以 Arg 结尾的肽段就没有标记。
SILAC 的标记不是一蹴而就的。细胞第一次接触¹³C₆标记氨基酸时,已有的蛋白质还是"轻"的,只有新合成的蛋白质才带"重"标记。随着细胞分裂,旧蛋白质被稀释,新蛋白质带标记——但需要足够的传代次数才能让全蛋白质组的标记效率达到可接受的水平。
一般而言,5-6 代传代后标记效率可达 99% 以上[1]。但"达到 99%"和"可以开始实验"是两回事——标记效率不够 99%,实验结果会出问题。
问题出在"未标记的重组混入轻组"。假设标记效率是 95%,意味着 5% 的"重"组蛋白质实际上还是轻的——这些蛋白质在质谱上会出现在轻峰位置,把本应只属于"轻"样品的信号拉高,导致轻重比值被压缩。比如一个真实上调 1.5 倍的蛋白质,因为 5% 未标记混入轻组,实际测到的比值可能被压到 1.3 倍——如果你的筛选阈值设在 1.5 倍,这个蛋白质就被漏掉了。
标记效率验证方法
正式实验前必须验证标记效率。方法很简单:取少量"重"标记细胞,裂解→酶切→质谱分析,检查含 Arg/Lys 的肽段中"重"峰占比。如果 99% 以上的肽段信号在"重"峰位置,标记效率合格。如果低于 99%,继续传代 1-2 代后重新检测[1]。
验证时需要注意精氨酸转换问题:部分细胞株(尤其是某些癌细胞系)会将精氨酸通过精氨酸酶途径转化为其他氨基酸(如鸟氨酸、脯氨酸),导致标记"泄漏"到非目标氨基酸上。如果检测到非 Arg/Lys 的肽段也出现了标记位移,说明发生了精氨酸转换——需要降低培养基中精氨酸浓度或改用¹³C₆-¹⁵N₄-Arg(质量位移更大,更容易区分)。
5-6 代传代的逻辑不是拍脑袋定的。细胞每分裂一次,旧蛋白质大致被稀释一半(理想情况),新合成的蛋白质带标记。每传一代,未标记蛋白质的比例大约减半——理论上 5 代后约 3%,6 代后约 1.5%。但实际标记效率往往高于理论值(细胞分裂时旧蛋白质也会通过自噬等途径加速清除),所以 5-6 代后标记效率通常可达 99% 以上。周转慢的蛋白质(如胶原蛋白)可能需要更多代。
SILAC 的应用场景按"你要比几组、样品什么来源"分四条路径。按实验需求对号入座。
路径 1:两组对比——双标 SILAC(轻 vs 重)
最经典的 SILAC 设计:一组细胞用普通氨基酸培养(轻),另一组用¹³C₆-Arg + ¹³C₆-Lys 培养(重)。处理组加药/感染/刺激后,轻重细胞等量混合,裂解→酶切→质谱。每个肽段出现一轻一重两个峰,峰面积比就是蛋白质表达量比。适用于"处理 vs 对照"的二组比较实验。
推荐试剂:¹³C₆-L-精氨酸 + ¹³C₆-L-赖氨酸各 50 mg(足够 500 mL 培养基,标记效率验证 + 正式实验;具体用量因培养基类型而异,以原始 protocol 为准)
路径 2:三组对比——三标 SILAC(轻 vs 中 vs 重)
三组比较时用三标:普通 Arg/Lys(轻,0 Da)+ ¹³C₆-Arg/Lys(中,+6 Da)+ ¹³C₆¹⁵N₄-Arg / ¹³C₆¹⁵N₂-Lys(重,+10/+8 Da)。三组细胞等量混合后一起跑质谱,一个肽段出现三个峰。适用于"对照 + 处理 A + 处理 B"的三组比较,或时间序列实验。
推荐试剂:¹³C₆-Arg + ¹³C₆-Lys(中标)+ ¹³C₆¹⁵N₄-Arg + ¹³C₆¹⁵N₂-Lys(重标),用量同路径 1,按实验组数加倍
路径 3:超级 SILAC——重标记细胞做"通用内标"
临床组织样品不能做 SILAC(组织不能传代培养),但可以用"超级 SILAC"策略:培养一株重标记细胞(如 HeLa),裂解后作为内标,等量加入不同来源的临床组织样品中。每个组织样品中的蛋白质与重标记内标一一配对,通过轻重比值做跨样品定量。这相当于把 SILAC 的"代谢标记"用作了"外标添加"——但标记物是完整的蛋白质组而非单一标准品,覆盖范围远超传统外标法[3]。
推荐试剂:¹³C₆-Arg + ¹³C₆-Lys,用量同路径 1,按内标细胞培养量加倍(大量培养后分装冻存供多次实验使用)
路径 4:细菌 SILAC——营养缺陷型菌株的定量蛋白质组学
细菌也可以做 SILAC,但需要赖氨酸营养缺陷型菌株(不能自己合成赖氨酸的突变株)。在培养基中加入¹³C₆-Lys,细菌生长过程中把标记赖氨酸吃进蛋白质里。由于细菌分裂快(20-30 分钟一代),5-6 代传代只需几个小时(分裂代数因菌种和培养条件而异),标记效率验证比哺乳动物细胞快得多。有研究用细菌 SILAC 实现了上千种蛋白质的定量分析(约占典型细菌蛋白质组的四分之一至三分之一)[4]。
推荐试剂:¹³C₆-L-赖氨酸,用量同路径 1(细菌 SILAC 一般只标 Lys,不需要标 Arg)
冰合试剂在同位素产品板块提供 SILAC 常用标记氨基酸,覆盖¹³C₆-L-精氨酸、¹³C₆-L-赖氨酸及¹³C₆¹⁵N₄-精氨酸、¹³C₆¹⁵N₂-赖氨酸等重标规格,可按实验需求灵活搭配。配套同位素产品覆盖代谢组学内标和脂肪酸标记,形成"同位素标记三大应用"完整产品矩阵。
• 冰合试剂同位素标记产品系列 — 覆盖¹³C/¹⁵N标记氨基酸、代谢组学内标、脂肪酸标记
• 姊妹篇:稳定同位素内标在 LC-MS 代谢组学中的选型与使用 — "外标添加法",与本文"代谢标记法"形成范式对照
• 姊妹篇:稳定同位素标记脂肪酸选型指南 — "代谢示踪",与本文"代谢标记"形成应用场景互补
▸ Q1:SILAC 和 TMT 选哪个?
如果你的样品是可培养的细胞系,优先选 SILAC——定量准确度最高,且从裂解开始轻重样品就混合在一起,消除了后续制备步骤的变异。如果样品是临床组织(不能传代培养),选 TMT 或超级 SILAC。如果只是初步筛选、样品量充足且对重复性要求不高,Label-free 也可以作为快速入门方案。
▸ Q2:标记氨基酸需要买几个?
双标 SILAC 买两个:¹³C₆-L-精氨酸 + ¹³C₆-L-赖氨酸。三标 SILAC 买四个:中标的¹³C₆-Arg + ¹³C₆-Lys,加重标的¹³C₆¹⁵N₄-Arg + ¹³C₆¹⁵N₂-Lys。细菌 SILAC 一般只买¹³C₆-L-赖氨酸一个(细菌 SILAC 通常只标 Lys)。每个 50 mg 足够配制约 500 mL 培养基(具体用量因培养基类型而异,以原始 protocol 为准),覆盖标记效率验证和正式实验。
▸ Q3:传代几次才够?
一般而言 5-6 代传代后标记效率可达 99% 以上[1]。但具体代数取决于细胞倍增时间和蛋白质更新速率——分裂快的细胞(如 HeLa,倍增约 24 h)5 代约 5 天,分裂慢的细胞可能需要 2-3 周。关键不是传代次数本身,而是标记效率——传代后取少量细胞做质谱验证,99% 以上合格才能开始正式实验。
▸ Q4:标记效率怎么验证?
取少量重标记细胞,裂解→胰酶酶切→LC-MS/MS 分析。检查含 Arg/Lys 的肽段中重峰占比——99% 以上合格。同时检查不含 Arg/Lys 的肽段是否出现标记位移(排除精氨酸转换问题)。如果效率不够,继续传代 1-2 代后重新检测。
▸ Q5:能不能用氘代(²H)氨基酸代替¹³C 标记?
不推荐。¹³C 标记色谱行为与轻标记一致,氘代标记可能导致保留时间偏移引入偏差(详见第二章)。
▸ Q6:哪些细胞株可以做 SILAC?
需要该氨基酸的营养缺陷型细胞株——即不能自己合成精氨酸或赖氨酸的细胞。大多数哺乳动物细胞株(如 HeLa、HEK293、A549)天然是精氨酸/赖氨酸营养缺陷型(因为哺乳动物不能自己合成这几种必需氨基酸),可以直接做 SILAC。少数能自行合成某些氨基酸的细胞株需要特殊处理。细菌 SILAC 需要构建赖氨酸营养缺陷型突变株[4]。
[1] Ong SE, Mann M. A practical recipe for stable isotope labeling by amino acids in cell culture (SILAC). Nature Protocols, 2006, 1(6): 2650-2660. [PMID: 17406521]
[2] Rauniyar N, Yates JR. Isobaric labeling-based relative quantification in shotgun proteomics. Journal of Proteome Research, 2014, 13(12): 5298-5308. [PMID: 25225701](待老师核实)
[3] Geiger T, Cox J, Ostasiewicz P, et al. Super-SILAC mix for quantitative proteomics of human tumor tissue. Nature Methods, 2010, 7(5): 383-385. [PMID: 20354512]
[4] Soares NC, Spat P, Krüger T, et al. Global dynamics of the Staphylococcus aureus and Bacillus subtilis transcriptomes and proteomes. Journal of Proteomics, 2013, 89: 1-14. [PMID: 23811254](待老师核实)
[5] Ong SE, Blagoev B, Kratchmarova I, et al. Stable isotope labeling by amino acids in cell culture, SILAC, as a simple and accurate approach to expression proteomics. Molecular & Cellular Proteomics, 2002, 1(5): 376-386. [PMID: 12118079]
[6] Bantscheff M, Schirle M, Sweetman G, et al. Quantitative mass spectrometry in proteomics: a critical review. Analytical and Bioanalytical Chemistry, 2007, 389(4): 1017-1031. [PMID: 17668158]
本产品(稳定同位素标记氨基酸)为科研用化学试剂,仅限实验室研究使用,不用于人体、食品、药品、化妆品及其他用途。文中 SILAC 方法参数(传代次数、标记效率阈值、氨基酸选择逻辑)来源于同行评审文献,仅供科研人员参考。对比表中数值为典型值,来源于公开文献,不构成对任何品牌产品的性能保证。文中引用的关键文献:① Ong SE, Mann M. Nat Protoc, 2006 [PMID:17406521];② Rauniyar N, Yates JR. J Proteome Res, 2014 [PMID:25225701](待老师核实);③ Geiger T et al. Nat Methods, 2010 [PMID:20354512];④ Soares NC et al. J Proteomics, 2013 [PMID:23811254](待老师核实);⑤ Ong SE et al. Mol Cell Proteomics, 2002 [PMID:12118079];⑥ Bantscheff M et al. Anal Bioanal Chem, 2007 [PMID:17668158]。
文中提及的 SILAC、TMT、iTRAQ 等方法为公开的蛋白质组学定量方法,不构成专利侵权建议。不同细胞株和实验体系下具体参数可能有差异,建议以原始文献和实验优化为准。
「冰合试剂」为单体(重庆)生物科技有限公司注册商标,本文由单体(重庆)生物科技有限公司发布。
邮箱 danticq@163.com
电话 023-68279488 | 19923948071 | 19112026971
地址 重庆市江北区盘溪路422号3幢
加关注
Copyright 2025 冰合试剂 All Rights Reserved.
渝ICP备2023007920号-3
 渝公网安备 50010502504579号
 磷脂系列