冰合试剂 · 科研科普
做荧光成像引导的纳米递送,大概都遇到过这样的困惑:把 Cy7 或 Cy5.5 挂到 PEG 胶束上,体外测荧光——信号很强,觉得没问题。一到小鼠活体成像,信号要么弱得几乎看不到,要么分布完全不对——该富集在肿瘤的地方没信号,肝脏肾脏倒是亮了。
问题往往不在染料本身,也不在胶束配方,而在「染料挂到胶束上之后发生了什么」。
这篇文章把三个陷阱的机制、定量边界和制备对策捋清楚,最后用五步决策树收束到定制制备选型——帮你判断自己的实验该用哪种染料、什么包载方式、哪种连接键、多长的 PEG。
花菁染料(Cy5.5、Cy7、ICG 等)是近红外荧光成像的主力。它们的荧光来自共轭多甲川链的辐射跃迁——激发态电子回到基态时释放光子。在稀溶液中,染料分子彼此远离,各自独立发光,荧光强度与浓度成正比。
但把花菁染料包载到胶束疏水内核后,情况完全变了。胶束疏水内核是一个纳米级的受限空间(典型胶束内核直径 5-20 nm),染料分子在这个狭小空间里被迫靠近,彼此之间的距离可能小于 5 nm——远小于它们在溶液中的平均距离。当染料分子以面对面(face-to-face)方式堆叠时,就形成了 H-aggregate。
H-aggregate 的后果是荧光淬灭。机制上,面对面的 π-π 堆叠使激发态能量通过非辐射通道耗散——能量在染料分子之间传递,最终以热的形式释放,而不是以光的形式释放。超快激光光谱研究显示,花菁染料附着到纳米粒子表面后,激发态寿命急剧缩短,非辐射耗散在皮秒时间尺度上就完成了(据 ScienceDirect 2015,需注意该研究对象为太阳能电池体系中的花菁染料,生物胶束中的确切时间尺度可能不同,但非辐射耗散加速的趋势一致)。
H-aggregate 淬灭不是"只要标记就会发生"——它有浓度依赖性,存在一个阈值。
一项发表于 Journal of Nanobiotechnology 2024 年的研究系统比较了 Cy3.5、Cy5.5 和 Cy7 在纳米粒子中的浓度依赖性荧光行为。研究以"染料当量"(dye equivalent)表示染料负载量,结果如下:
数据来源:J Nanobiotechnol 2024
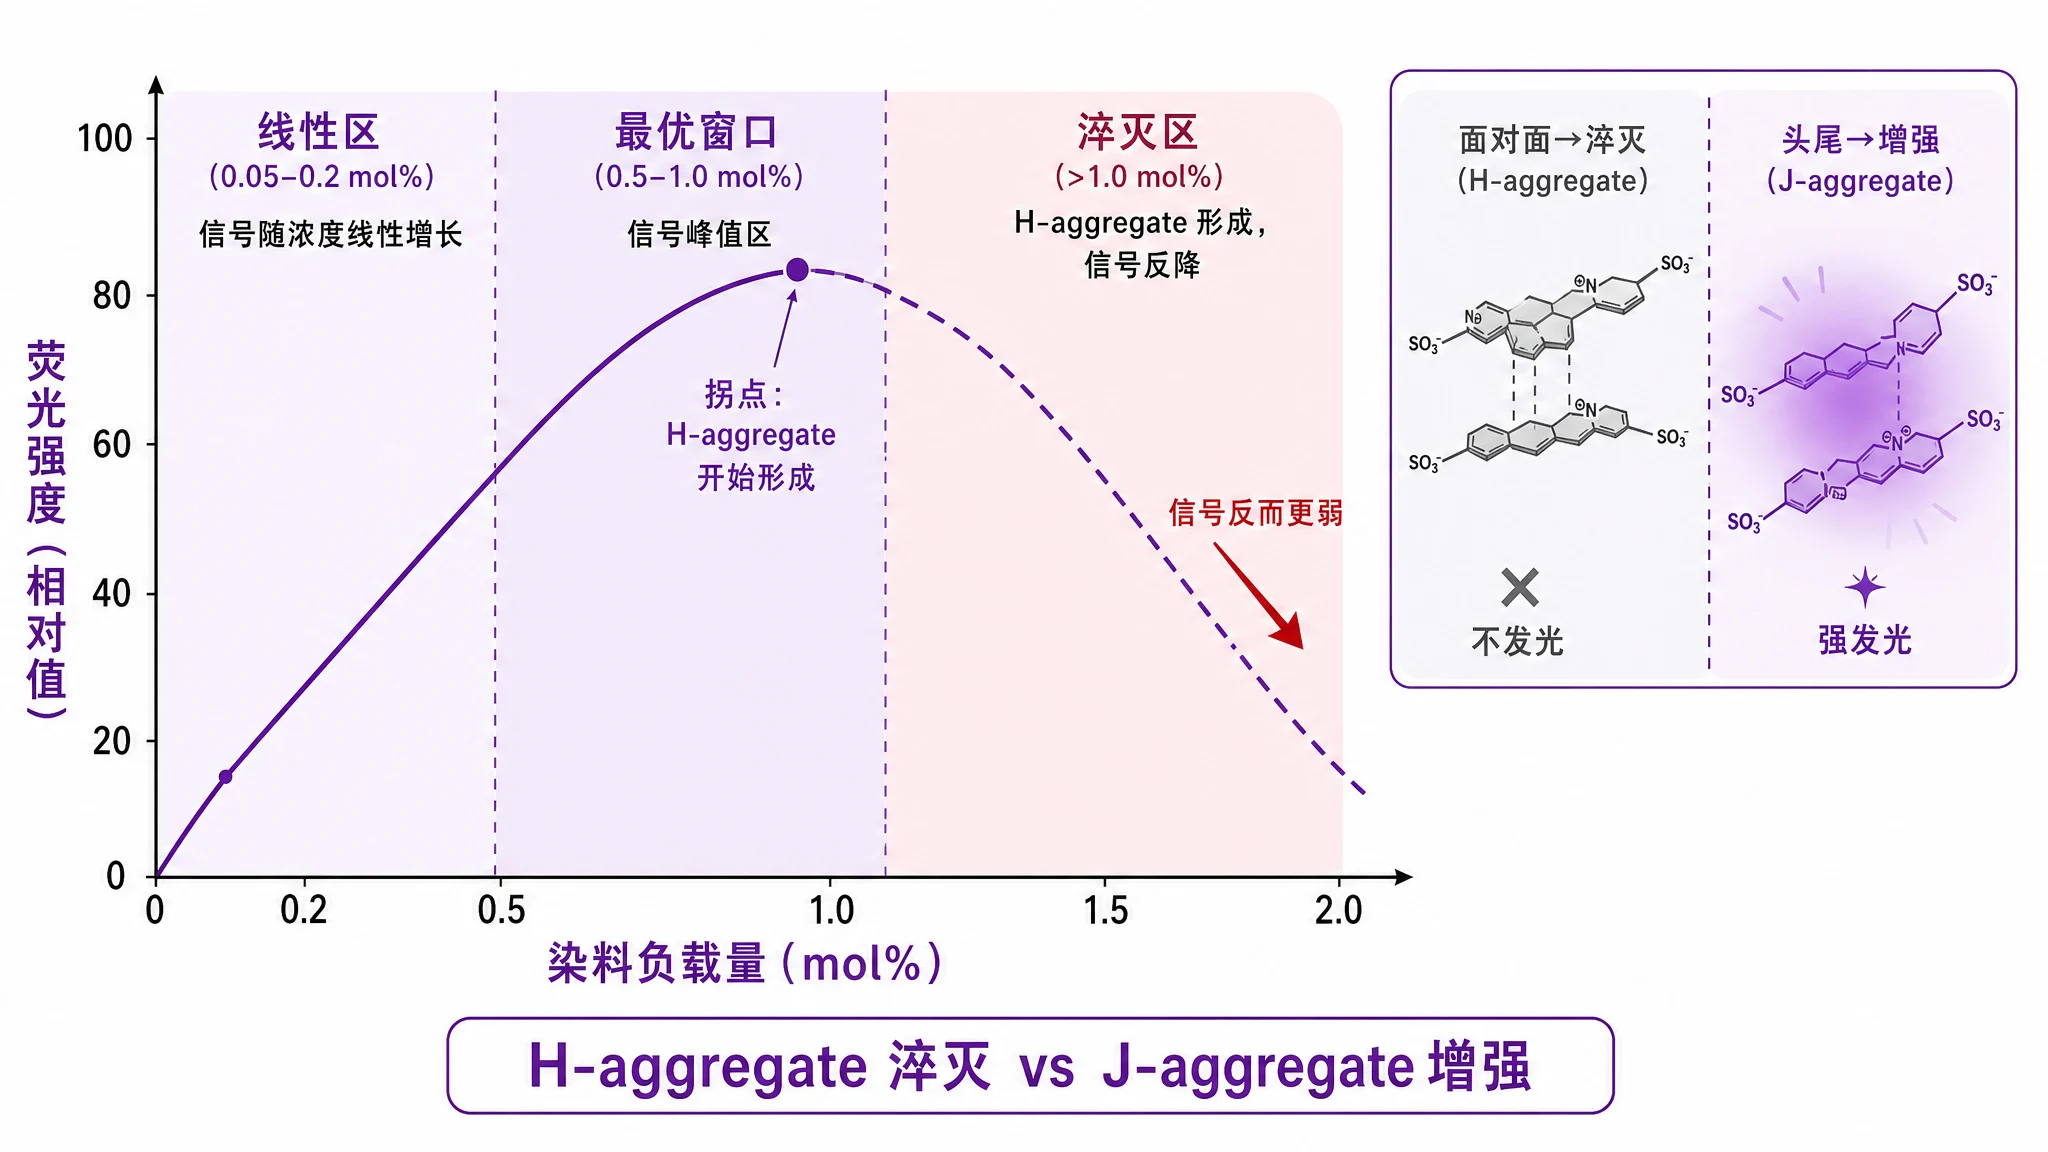
需要注意的是,该研究的对象是二氧化硅纳米粒子,不是 PEG-PLGA 胶束。但 H-aggregate 自淬灭的浓度依赖性规律在胶束疏水内核中同样适用——甚至更容易触发,因为胶束疏水内核的染料局部浓度通常高于二氧化硅体系中的均匀分散浓度。
另一个容易被忽略的信号是红移。染料当量越高,荧光发射峰红移越显著(最大约 18 nm)。如果你在荧光成像时发现发射波长比预期偏移了 10 nm 以上,这不是仪器误差——很可能是染料已经开始聚集,H-aggregate 正在形成。
花菁染料的聚集行为有两种模式,结果截然相反:
H-aggregate:染料分子以面对面方式堆叠,吸收光谱蓝移,荧光淬灭。这是胶束疏水内核中最常见的聚集模式——受限空间迫使染料面对面排列。
J-aggregate:染料以头尾(head-to-tail)方式排列,吸收光谱红移,荧光可能增强。J-aggregate 在特定条件下形成,比如染料在有序模板(如 DNA 或蛋白质通道)上排列时。
文献显示,花菁染料的聚集行为高度依赖浓度和微环境——在稀溶液中不聚集,浓度升高后先形成 J-aggregate,进一步升高则转变为 H-aggregate。在胶束疏水内核这种高浓度受限环境中,H-aggregate 是主要模式——这也是为什么"物理包载到内核"比"化学偶联到 PEG 末端"更容易淬灭。
理解了 H-aggregate 的浓度依赖性,制备策略就清晰了:
物理包载到疏水内核:染料与疏水药物一起包载到胶束内核,操作简单,但染料局部浓度高,容易触发 H-aggregate 淬灭。适合染料负载量低(<0.2 当量)的场景,或者不在乎荧光定量、只需要"看到信号就行"的定性实验。
化学偶联到 PEG 末端:染料通过共价键连接到 PEG 末端,处于亲水壳层,染料分子间距大,聚集概率低。适合需要荧光定量、需要宽线性范围的成像实验。缺点是偶联化学反应可能影响染料的光物理性质,且偶联效率需要验证。
混合策略:部分染料化学偶联到 PEG 末端(保证信号基线),部分物理包载到内核(提高信号强度)。但混合策略的定量关系更复杂,建议在单一策略优化后再尝试。
一般而言,如果选择物理包载,建议染料负载量控制在胶束疏水组分的 0.5-1 mol% 以下(据二氧化硅纳米粒子中的当量数据推断,胶束中的具体阈值可能更低)。如果选择化学偶联到 PEG 末端,染料-PEG 的修饰密度建议不超过总 PEG-脂质的 5 mol%,以保持 PEG 壳层的亲水屏蔽功能不被破坏。
需要说明的是,上述建议基于间接证据推断——目前缺乏"花菁染料在 PEG-PLGA 胶束疏水内核中 H-aggregate 形成的具体 mol% 阈值"的直接数据。建议通过预实验,以不同染料负载量做荧光强度曲线,找到信号开始下降的拐点。
H-aggregate 淬灭看起来像是纳米载体荧光标记的"物理天花板":只要染料在受限空间中聚集,信号就不可避免地变弱。但有一类染料反其道而行之——单个分子不发光,聚集后反而荧光增强。这就是 AIE(Aggregation-Induced Emission,聚集诱导发光)效应,由唐本忠院士 2001 年首次报道,获 2017 年度国家自然科学奖一等奖。
机制上,AIE 分子(如 TPE 类)的结构像"风车"——多个苯环通过中心碳原子连接,可以自由旋转。单个分子在溶液中接收光能后,能量驱动苯环旋转,以旋转动能形式耗散,不发光。但当 AIE 分子聚集后,分子间距离很近,苯环"转不动了"——分子内运动受限,非辐射通道被关闭,能量只能以光的形式释放,荧光增强。而传统花菁染料的聚集淬灭(ACQ)机制更简单:面对面的 π-π 堆叠使能量在分子间传递消耗掉了,不发光。
一项研究显示,TPE-Ade 荧光探针在水溶液(聚集态)中的荧光强度比在良溶剂中(分子分散态)增强约 160 倍(据 ScienceDirect 2020)。据得到 App 再生医学教材记载,AIE 点能够准确、定量地示踪脂肪干细胞的命运及其再生能力达 42 天,体内驻留时间远长于 GFP 等传统荧光标记。
AIE 染料在胶束疏水内核中的天然优势非常明确:传统花菁染料聚集→淬灭,AIE 染料聚集→荧光增强。高负载量不仅不会触发淬灭,反而获得巨大的信号增益。AIE 点还具有高量子产率、抗光漂白、体内毒性低等优势。
AIE 染料当前的一个短板是:多数 AIE 分子的激发/发射波长在可见光区,近红外一区/二区的 AIE 染料仍在开发中。如果你的成像设备要求近红外二区激发,花菁染料仍是当前更成熟的选择,但需要严格控制染料负载量避免 H-aggregate 淬灭。一般而言,如果成像设备支持可见光或近红外一区激发,且需要长时间体内示踪,AIE 染料是比花菁染料更优的选择。
下一章转到第二个陷阱——连接键。染料挂对了位置、选对了类型,但如果连接键在体内断裂,信号照样不准。
花菁染料聚集→淬灭,AIE 染料聚集→荧光增强。选对染料类型,"聚集"从信号杀手变成信号增益器——但 AIE 染料的近红外波段仍是短板。
近红外染料挂到 PEG 胶束上,通常通过一个化学键连接。在体外,这个键很稳定——PBS 缓冲液里没有酯酶,染料牢牢挂在 PEG 上,荧光信号准确反映胶束的位置和浓度。
但一到体内,情况完全不同。血浆中含有大量酯酶(特别是羧酸酯酶,Ces),它们的功能就是催化酯键水解。如果你的染料是通过酯键挂在 PEG 上的,血浆酯酶会把酯键切断,释放游离染料。脱落的染料分子量小(Cy7 约 500-800 Da,取决于具体修饰形式),会快速从胶束上扩散出去,随血液循环分布到全身。
这时你的荧光成像信号反映的不再是胶束的分布,而是游离染料的分布——游离染料会快速富集在肾脏(小分子经肾小球滤过)和肝脏(代谢清除),而胶束可能还在血液中循环或在肿瘤缓慢富集。你看到肝肾亮了、肿瘤没亮,以为胶束被肝肾清除、靶向失败——实际上胶束可能还在血液里,只是染料已经从胶束上掉下来了。
酯键在血浆中的水解不是"几天才慢慢断"——它是分钟级的反应。
一项以姜黄素二琥珀酸酯(CDD,含酯键的前药)为模型的研究显示,酯键在血浆中的水解遵循连续伪一级反应动力学(PMID:35520191)。该研究以姜黄素前药为模型,酯键水解的化学规律具有普遍性,但染料-PEG 酯键的具体水解速率可能因连接基团不同而存在差异。伪一级反应意味着水解速度与酯键浓度成正比,反应速率由血浆酯酶浓度决定。
该研究还揭示了一个容易被忽略的问题:种属差异显著。血浆酯酶活性排序为:大鼠 ≫ 人 > 狗。大鼠血浆中的水解速度远快于人——这意味着在大鼠模型中观察到的"信号衰减"可能比人体实际情况更严重。如果你在大鼠中看到荧光信号 30 分钟内就明显衰减,不能直接推断人体也会这么快——但也不能因此认为人体中酯键稳定,只是衰减速度可能比大鼠慢一些。
不同连接键在血浆中的稳定性差异很大。据 ScienceDirect 综述,可以排出一个稳定性梯度:
需要说明的是,上述稳定性梯度基于化学常识和不同研究的间接证据,目前缺乏同一实验条件下四种连接键在血浆中半衰期的头对头对比数据。但方向性判断是可靠的:酯键最不稳定,三唑键和 C-C 键最稳定。
连接键的选择取决于你的成像目的——这是一个"先问目的再选键"的决策:
目的是追踪胶束的体内分布:你需要荧光信号始终代表胶束的位置。选不可裂解键——三唑键(通过点击化学连接,如 DBCO-PEG-CY7 或 Cy7-N3)或直接碳碳键。这样染料不会从胶束上脱落,信号真实反映胶束分布。
目的是做"激活型"探针:你希望染料在到达靶区前不发光(或弱发光),到达靶区后才亮。这时可裂解键反而是优势——设计一个"染料-可裂解键-quencher"系统,到达靶区后连接键被靶区特异性酶切割,染料与 quencher 分离,荧光"打开"。这种设计中,酯键的可裂解性是功能,不是缺陷。
目的是药物释放示踪:你想知道胶束在体内什么时候、在哪里释放了药物。可以把染料和药物通过同一个可裂解键连接到胶束上——染料脱落的同时药物也在释放,荧光信号变化反映药物释放事件。但要注意:脱落后游离染料的分布仍然不等于胶束分布,只代表"释放事件发生的位置"。
酯键断裂陷阱最隐蔽的地方在于:体外验证时一切正常。PBS 缓冲液(pH 7.4)中没有酯酶,酯键稳定,荧光信号准确。只有进入含血浆酯酶的体内环境,酯键才开始断裂。
这意味着:不能用体外荧光数据直接推断体内成像效果。 如果你的连接键是酯键,建议在体外验证中加入血浆共孵育实验——把荧光标记胶束与大鼠或人血浆共孵育,观察荧光信号是否随时间衰减、衰减速度多快。如果血浆共孵育后信号快速衰减,说明酯键在体内大概率也会快速断裂,需要换连接键。
下一章看第三个陷阱——PEG 水合层对荧光信号的遮蔽效应。
体外荧光强不等于体内信号准——酯键在血浆中被酯酶分钟级水解,脱落的游离染料分布≠胶束分布。追踪用不可裂解键,释放用可裂解键。
在前文 RGD-PEG 的文章中我们讲过,PEG 链太长太柔会从"刷子"构象回缩成"蘑菇"构象,折叠回来遮蔽配体活性构象。在荧光标记胶束中,PEG 的遮蔽效应多了一个维度——它不仅遮蔽配体,还遮蔽荧光信号。
PEG 在胶束表面形成一层亲水水合层,厚度取决于 PEG 链长。这层水合层是胶束长循环的基础——它阻止血浆蛋白吸附(抗蛋白冠效应),延长体内循环时间。但水合层对光有物理相互作用:散射和吸收。如果染料标记在 PEG 末端,PEG 水合层就像一层"毛玻璃"罩在染料外面,荧光信号在穿过水合层时被衰减。
PEG 水合层对光的影响主要是散射,不是吸收。一项研究显示,PEG 浓度(0-4%)对免疫复合物的光散射有显著影响,散射强度与 PEG 浓度和分子量相关(PMID:6854025)。
但这里有一个好消息:近红外窗口(NIR-I: 650-950 nm, NIR-II: 1000-1700 nm)正是生物组织和水的光吸收最低的波段。Nature Communications 2021 年的光子传播模拟研究确认,水在近红外一区的吸收极低,近红外窗口的设计初衷就是避开组织的强吸收区。PEG 水合层的主要成分是水,因此 PEG 对近红外光的吸收贡献微乎其微。
综合来看,PEG 水合层对近红外荧光的遮蔽效应更多来自散射而非吸收,且在近红外窗口内影响有限——但"有限"不等于"没有"。特别是当 PEG 链长达到 5000 时,水合层厚度显著增加,散射路径变长,遮蔽效应累积。
前次 RGD-PEG 调研中通过 ¹H NMR 确认的 PEG 链长-柔性关系,在荧光标记场景中有一个特殊的延伸效应:
PEG 链在胶束表面有两种构象状态:刷子构象(链伸展,末端远离载体表面,染料暴露在水相中,荧光信号好)和蘑菇构象(链蜷缩,末端贴近载体表面,染料被拉回表面附近)。
长链 PEG(5000)柔性大,更容易从刷子回缩成蘑菇——末端染料被拉回贴近胶束表面,与表面其他分子(包括其他染料、疏水药物、磷脂头部)的相互作用概率增加。这不仅增加荧光被散射遮蔽的概率,还可能引发染料与表面分子的非特异性相互作用,进一步改变光物理性质。
短链 PEG(750)的染料末端更暴露在水相中,荧光信号更好——但 PEG 太短会削弱亲水屏蔽功能,影响胶束长循环。PEG 2000 再次成为折中选择:链够长能保持亲水屏蔽,又不至于太柔回缩成蘑菇。
跟 RGD-PEG 文章中一样,胆固醇掺入(>20 mol%)会显著增加 PEG 链柔性(据 ScienceDirect 综述)。这意味着高胆固醇配方(如 LNP 中胆固醇可达 30-40 mol%)中,PEG 链更容易回缩,蘑菇构象比例更高,染料被拉回表面的概率更大。
如果你的荧光标记胶束配方中胆固醇比例较高,PEG 2000 的遮蔽风险比低胆固醇配方更大。这不是"不能用",而是需要在荧光验证时排查:如果发现信号低于预期,先检查是不是 PEG 构象把染料拉回了表面,而不是盲目增加染料负载量——增加负载量反而可能触发第一章讲的 H-aggregate 淬灭。
PEG 遮蔽效应的制备对策不是"缩短 PEG"那么简单——缩短 PEG 会牺牲长循环性能。更合理的策略是优化染料挂载位置:
染料挂载在 PEG 末端:染料处于 PEG 链最远端,理论上最暴露。但受蘑菇构象影响,长链 PEG 末端可能被拉回表面。适合 PEG 2000 以下链长,或低胆固醇配方。
染料挂载在 PEG 中间:通过分支 PEG 或双功能 PEG,把染料挂在 PEG 链中段。染料被 PEG 链两端"保护",位置相对固定,不受蘑菇构象影响。但合成复杂度高,且染料被 PEG 包裹,散射遮蔽可能更严重。
染料物理包载在内核+少量化学偶联在 PEG 末端:内核包载提供信号强度,PEG 末端偶联提供信号稳定性。但需要控制总量避免 H-aggregate(第一章)和连接键断裂(第二章)问题。
需要说明的是,目前缺乏"PEG 750/2000/5000 不同链长对近红外荧光透过率"的直接光谱测量数据。上述分析基于 PEG 光散射效应、近红外窗口光学特性和 PEG 链构象行为的间接证据推断。遮蔽效应的实际影响建议通过预实验验证:用相同染料、不同 PEG 链长制备胶束,比较体外荧光强度差异——如果差异显著,说明 PEG 遮蔽效应在你的体系中不可忽略。
下一章把三个陷阱放在一起看——它们不是独立问题,是会叠加的连锁反应。
PEG 水合层对近红外荧光的遮蔽以散射为主、吸收为辅,近红外窗口帮了忙——但"有限"不等于"没有"。长链 PEG 蘑菇构象把染料拉回表面,遮蔽+非特异性相互作用双重叠加。
前面三章分别讲了三个陷阱的独立机制。但在实际体系中,三个陷阱不是各自独立发生的——它们会叠加,甚至互相加剧。理解这种叠加效应,是排查"信号不对"的关键。
考虑一个常见的制备方案:Cy7 通过酯键连接到 PEG 5000 末端,PEG-PLGA 胶束物理包载了额外 Cy7 在疏水内核,配方中含 30 mol% 胆固醇。这个方案同时踩中了三个陷阱:
陷阱一叠加:内核中物理包载的 Cy7 在高浓度下形成 H-aggregate,荧光淬灭。化学偶联在 PEG 末端的 Cy7 虽然不聚集,但内核淬灭导致整体信号基线下降。
陷阱三叠加:PEG 5000 链又长又柔,在 30 mol% 胆固醇配方中蘑菇构象比例高,末端 Cy7 被拉回贴近胶束表面,与内核中已经聚集的 Cy7 发生能量转移,进一步加剧信号衰减。
陷阱二叠加:酯键在血浆中被酯酶水解,PEG 末端的 Cy7 脱落。脱落的游离 Cy7 快速经肾清除,信号从胶束位置消失。此时你看到的荧光信号来自:内核中淬灭后残余的微弱 Cy7 + 脱落后尚未清除的游离 Cy7——两者都不代表胶束的真实分布。
三重失真叠加的结果:你可能在活体成像中看到信号很弱、分布很散、肝肾先亮——然后得出"胶束被肝肾快速清除、靶向失败"的错误结论。实际上胶束可能还在血液中正常循环,只是你的荧光信号系统已经崩溃了。
当你的荧光成像数据出现异常时,先别急着归因于"胶束配方不行"或"靶向失败"。用下面的诊断表排查信号失真的来源:
诊断表给了一个排查优先级,但实际操作中建议按以下顺序排查——从最容易验证的开始:
第一步:排查陷阱一(H-aggregate)。 做染料负载量-荧光强度曲线。如果高负载量下信号下降,说明 H-aggregate 在起作用。降负载量是最快的修正——不需要改合成路线,只需要调配方比例。
第二步:排查陷阱二(连接键断裂)。 做血浆共孵育实验。如果信号在血浆中快速衰减而 PBS 中稳定,说明连接键是问题。换连接键需要改合成路线,成本较高,但这是体内信号准确性的根本保障。
第三步:排查陷阱三(PEG遮蔽)。 做不同 PEG 链长的荧光对比。如果信号差异显著,说明 PEG 遮蔽不可忽略。调 PEG 链长也需要改原料,但通常不需要改合成路线——换不同分子量的 PEG-脂质即可。
这个排查顺序的逻辑是:先排除"不用改合成就能修"的问题,再排除"需要改合成才能修"的问题。从成本最低的修正开始,避免一开始就推翻整个制备方案。
下一章把所有变量整合成五步决策树——从成像目的倒推到制备方案。
三个陷阱不是独立问题,是连锁反应。排查从成本最低开始:先降负载量(排H-aggregate),再做血浆共孵育(排连接键),最后调PEG链长(排遮蔽)。
前面四章拆解了三个陷阱的机制和对策,涉及染料选择、包载方式、连接键类型、PEG 链长四个变量。实际选型时不需要从头到尾想一遍——从你的成像目的出发,倒推五个问题就行。
体内胶束分布追踪:你需要信号始终代表胶束位置。→ 不可裂解连接键 + 化学偶联到 PEG 末端 + 控制染料负载量避免 H-aggregate。
体外荧光标记验证:体外 PBS 环境,没有酯酶,H-aggregate 是唯一主要风险。→ 控制染料负载量即可,连接键类型不关键。
激活型探针(靶区才亮):你需要染料在到达靶区前不发光。→ 可裂解连接键(酯键或特定酶敏感键)+ 染料-quencher 系统设计。
药物释放示踪:你需要知道药物在哪里释放。→ 染料与药物通过同一可裂解键连接,脱落信号代表释放事件。
成像设备支持可见光/近红外一区激发:AIE 染料是更优选择——聚集态荧光增强、体内驻留时间长、抗光漂白。特别是需要长时间示踪(>7天)的场景,AIE 点的 42 天示踪能力远超传统花菁染料。
成像设备要求近红外二区激发:花菁染料(Cy7、ICG)仍是当前更成熟的选择——NIR-II AIE 染料仍在开发中。但需严格控制染料负载量避免 H-aggregate 淬灭,建议负载量控制在低当量区(<0.2 当量)。
化学偶联到 PEG 末端:染料在亲水壳层,聚集概率低,信号线性范围宽。适合需要荧光定量的实验。但偶联化学反应可能影响染料光物理性质,需验证偶联效率。
物理包载到疏水内核:操作简单,但染料局部浓度高,容易触发 H-aggregate。适合染料负载量低的定性实验,或使用 AIE 染料(聚集反而增强)。
混合策略:PEG 末端化学偶联(信号基线)+ 内核物理包载(信号增强)。适合需要高信号强度的场景,但定量关系复杂,建议单一策略优化后再尝试。
追踪用:不可裂解键——三唑键(点击化学,如 DBCO-PEG-染料或 N₃-PEG-染料)或 C-C 键。染料不会脱落,信号真实反映胶束分布。
释放用:可裂解键——酯键(血浆酯酶敏感)或特定酶敏感键(如 MMP 底物序列)。染料脱落代表释放事件。
激活型探针用:可裂解键 + quencher 设计。到达靶区后键被切割,染料与 quencher 分离,荧光"打开"。
PEG 750-1000:染料末端暴露在水相中,荧光信号好,但亲水屏蔽弱,体内循环短。适合体外实验或短时间成像。
PEG 2000:主流平衡选择——亲水屏蔽够用,蘑菇构象风险可控,信号衰减有限。体内实验首选。
PEG 3400-5000:长循环好,但蘑菇构象风险大,末端染料可能被拉回表面。如果必须用长链 PEG,建议染料挂载在 PEG 中段而非末端,或增加染料-PEG 修饰密度补偿遮蔽。
需要说明的是,上表中的推荐是基于前文分析的方向性建议,实际选择需结合成像设备参数和预实验结果调整。特别是染料负载量和 PEG 链长,目前缺乏系统性的跨参数直接对比数据,建议通过预实验确定最优组合。
冰合试剂(单体(重庆)生物科技有限公司)近红外荧光标记产品线覆盖花菁染料-PEG 偶联物、染料-聚合物共聚物和 AIE 定制制备三个方向。
花菁染料-PEG 系列:Cy5-PEG-Mal、Cy7-PEG-NHS 等——花菁染料通过不同端基(Mal、NHS、N₃、DSPE 等)连接 PEG,可用于化学偶联到胶束表面或脂质体膜上。
染料-聚合物共聚物:PLGA-Cy7——花菁染料共价连接到 PLGA 链上,可直接制备荧光标记胶束(分子量和 LA:GA 比例以实际 COA 为准,建议联系技术支持确认)。适合需要荧光标记与药物包载一体化的场景。
ICG 衍生物:ICG-azide(ICG 叠氮化物,可通过点击化学连接)、ICG amine(ICG 伯胺)——ICG 是 FDA 批准的近红外荧光染料,临床转化成熟度高,适合需要临床转化前景的实验。
AIE 定制制备:AIE 染料-PEG-PLGA 胶束可根据实验需求定制,包括 AIE 分子选择、PEG 链长、聚合物类型和染料负载量。建议联系技术支持沟通具体参数。
本文涉及的主题与以下已发布资讯文章关联,建议延伸阅读:
• PLGA-PEG 嵌段共聚物胶束——了解胶束骨架材料的选择(PLGA 分子量、LA:GA 比例)与胶束稳定性基础
• 花菁染料"波长陷阱"——如果选择花菁染料,甲川链延长对波长和稳定性的连锁影响是前序知识
• Cy3/Cy5/Cy5.5 脂质体成像——脂质体(非胶束)的荧光成像波段选型,与本文形成"脂质体 vs 胶束"的互补
• PEG-脂质链长梯度——从锚定链长角度理解 PEG 构象对表面分子的影响,与第三章 PEG 遮蔽效应呼应
▸ Q1:Cy7 物理包载到胶束里,怎么判断有没有发生 H-aggregate 淬灭?
最直接的判断方法是做染料负载量-荧光强度曲线。配制一系列不同 Cy7 负载量(0.05、0.1、0.5、1.0、2.0 mol%)的胶束,测荧光强度。如果信号在低负载量时随浓度线性增长,但在某个浓度后开始下降或平台——那个拐点就是 H-aggregate 开始形成的阈值。另一个信号是发射光谱红移:如果发射峰比游离 Cy7 红移超过 10 nm,说明聚集已经开始。
▸ Q2:AIE 染料和花菁染料能同时用吗?
理论上可以,但没有必要。AIE 染料在聚集态发光,花菁染料在聚集态淬灭——两者放在一起,花菁染料的淬灭会"吃掉"AIE 染料的信号增益。如果你的目的是高信号,直接用 AIE 染料包载到内核即可。如果你的成像设备要求近红外二区激发而 AIE 染料覆盖不了,用花菁染料化学偶联到 PEG 末端(避免聚集)更合理。
▸ Q3:酯键连接的染料体外成像很好,体内为什么不靠谱?
体外通常用 PBS 缓冲液,没有血浆酯酶,酯键稳定。体内血浆中含有大量羧酸酯酶(Ces),会把酯键水解,释放游离染料。脱落的染料分子量小,快速经肾清除,分布不再代表胶束位置。建议做血浆共孵育实验:把荧光标记胶束与大鼠或人血浆 37°C 共孵育,观察荧光信号是否随时间衰减——如果 30 分钟内信号明显衰减,说明酯键在体内大概率也会快速断裂。
▸ Q4:PEG 2000 够不够,要不要上 5000?
一般而言 PEG 2000 是主流平衡选择。PEG 5000 长循环更好,但蘑菇构象风险更大——末端染料可能被拉回贴近胶束表面,增加遮蔽和与表面分子的非特异性相互作用。如果你的配方中胆固醇比例较高(>20 mol%),PEG 5000 的遮蔽风险进一步加剧。建议先用 PEG 2000 做预实验,如果体内循环时间不够再考虑换 5000,同时把染料挂载位置从 PEG 末端调整到中段。
▸ Q5:我想做"激活型"荧光探针(没到靶区不发光,到靶区才亮),怎么选连接键?
激活型探针的核心是"到达靶区后连接键被靶区特异性酶切割"。如果靶区是肿瘤微环境(MMP 高表达),可以用 MMP 底物序列作为连接键——序列两端分别连染料和 quencher,MMP 切割后染料与 quencher 分离,荧光打开。如果靶区是溶酶体(组织蛋白酶高表达),可以用组织蛋白酶敏感序列。连接键的选择取决于靶区酶的表达谱,建议先查文献确认靶区酶类型再设计。
▸ Q6:冰合试剂能定制近红外荧光标记胶束吗?
理解了三个陷阱之后,你的定制需求其实已经清晰了——选什么染料、什么连接键、多长 PEG,取决于你的成像目的。冰合试剂提供近红外荧光标记 PEG 胶束的定制制备服务,包括染料选择(花菁 Cy5.5/Cy7 或 AIE 染料)、包载方式(化学偶联或物理包载)、连接键类型(酯键/酰胺键/三唑键)、PEG 链长(750/2000/5000)和聚合物类型(PLGA-PEG、PEG-PLA 等)的灵活组合。建议联系技术支持沟通具体实验需求,由技术团队协助确定最优制备方案。
想做近红外荧光标记 PEG 胶束?冰合试剂(单体(重庆)生物科技有限公司)提供完整的定制制备服务,从染料选择、连接键、PEG 链长到聚合物类型全程技术对接。
邮箱 danticq@163.com
电话 023-68279488 | 19923948071 | 19112026971
地址 重庆市江北区盘溪路422号3幢
加关注
Copyright 2025 冰合试剂 All Rights Reserved.
渝ICP备2023007920号-3
 渝公网安备 50010502504579号
 磷脂系列