2025年,全球PD-(L)1抑制剂市场销售额据行业报告估算约567亿美元。但在这座金山背后,有一个尴尬的数字:多数瘤种PD-1单药的客观缓解率(ORR)仅20%-30%——意味着约80%的患者无法从单药治疗中直接获益。
这不是个别癌种的问题。黑色素瘤(皮肤型)的ORR在欧美人群中约40%-50%,算是PD-1应答最好的瘤种之一;但在中国更常见的肢端型黑色素瘤,ORR仅约12.6%(MELATORCH III期,特瑞普利单抗对比达卡巴嗪)[3]。非小细胞肺癌ORR 20%-30%,前列腺癌约5%,而微卫星稳定型(MSS)结直肠癌的免疫治疗应答率极低。PD-L1低表达或阴性人群的获益更弱。
耐药分两种:原发耐药——一开始就无应答,T细胞从未真正被激活;继发耐药——起初有效后进展,T细胞被激活后被肿瘤微环境逐步压制。无论是哪种,行业核心矛盾已经从"有效性验证"转向"解决耐药、突破冷肿瘤、延长后线生存"。
传统解决思路沿着一条直觉路径推进:让T细胞更活跃——在PD-1阻断的基础上叠加更多激活信号,2026年ASCO上展示的多条产业路线都遵循这个逻辑。
但2026年8月10日Nature Nanotechnology发表的一篇论文,走了一条完全不同的路[1]。研究团队没有试图让T细胞更活跃,而是让T细胞"代谢静息"——听起来反常识,但恰恰是这种"静息"恢复了T细胞的"干性",让耗竭的T细胞重新具备了自我更新和持续杀伤的能力。
理解这条路径,需要先回答一个问题:T细胞的"干性"是什么,为什么它决定了PD-1的成败?
2016年,两个研究团队在Nature和Immunity上同期报道了一类特殊的T细胞亚群:PD-1+ TCF1+ CXCR5+ Tim-3- stem-like CD8 T细胞[2]。这些细胞居住在淋巴组织中,表达PD-1但尚未走向终末耗竭——它们像干细胞一样,能够持续增殖并分化为更终末的效应T细胞(PD-1+ CXCR5- Tim-3+),源源不断地供给"前线兵力"。
这类细胞被命名为Tpex(衰竭前体T细胞),它们是PD-1阻断疗效的关键效应群体。PD-1抑制剂之所以有效,不是因为它直接杀死了肿瘤细胞,而是因为它"解了刹车"——让Tpex细胞得以持续扩增、分化、补充耗竭的效应T细胞库。如果肿瘤微环境中的Tpex细胞干性丢失,PD-1就失去了作用对象——这正是PD-1耐药的核心机制之一。
干性维持的分子调控在近年逐渐清晰。2025年Nature Immunology报道,SATB1蛋白在TPRO(tissue-resident progenitor,组织驻留前体)T细胞和记忆CD8+ T细胞中选择性富集,通过调控Tcf7、Bach2、Myb等干性相关基因的染色质可及性和转录活性,维持T细胞的quiescence(静息)状态[3]。SATB1的发现揭示了一个关键点:干性不是T细胞的默认状态,而是需要主动维持的——一旦维持机制被破坏,T细胞就滑向终末耗竭。
肠道菌群代谢物对T细胞干性的调控也已有先例。2025年Immunity报道,肠道菌群代谢物丁酸通过激活FOXO1通路,促进CD8+ T细胞干性分化,增强抗肿瘤免疫和免疫治疗反应[4]。在接受ICB(免疫检查点阻断)治疗的黑色素瘤患者中,丁酸代谢活性高的菌群与更好的临床反应相关[4]。这为"肠道代谢物调控T细胞干性"提供了概念验证——而Nature Nanotechnology的新研究,正是沿着这条线索找到了一个更高效的分子。
3,4-二羟基苯甲酸(3,4-DHBA),又名原儿茶酸,分子式C₇H₆O₄。它不是实验室合成的药物分子,而是肠道菌群代谢膳食多酚(如花青素、儿茶素)的天然产物——菌群通过断裂膳食多酚的C-C键产生3,4-DHBA,在体循环中的浓度可远高于母体化合物[5]。
研究团队通过体外筛选大量肠道代谢物,发现3,4-DHBA在促进T细胞干性分化方面表现突出。体外实验显示,3,4-DHBA处理显著增加中央记忆T细胞及Tcf1+与Foxo1+干细胞样T细胞比例,并能在白细胞介素-2(IL-2)撤除后维持T细胞存活——IL-2是T细胞增殖的关键生长因子,撤除后通常意味着T细胞走向凋亡,而3,4-DHBA处理的细胞存活了下来[1]。
这个发现的核心机制是一条代谢重编程通路:
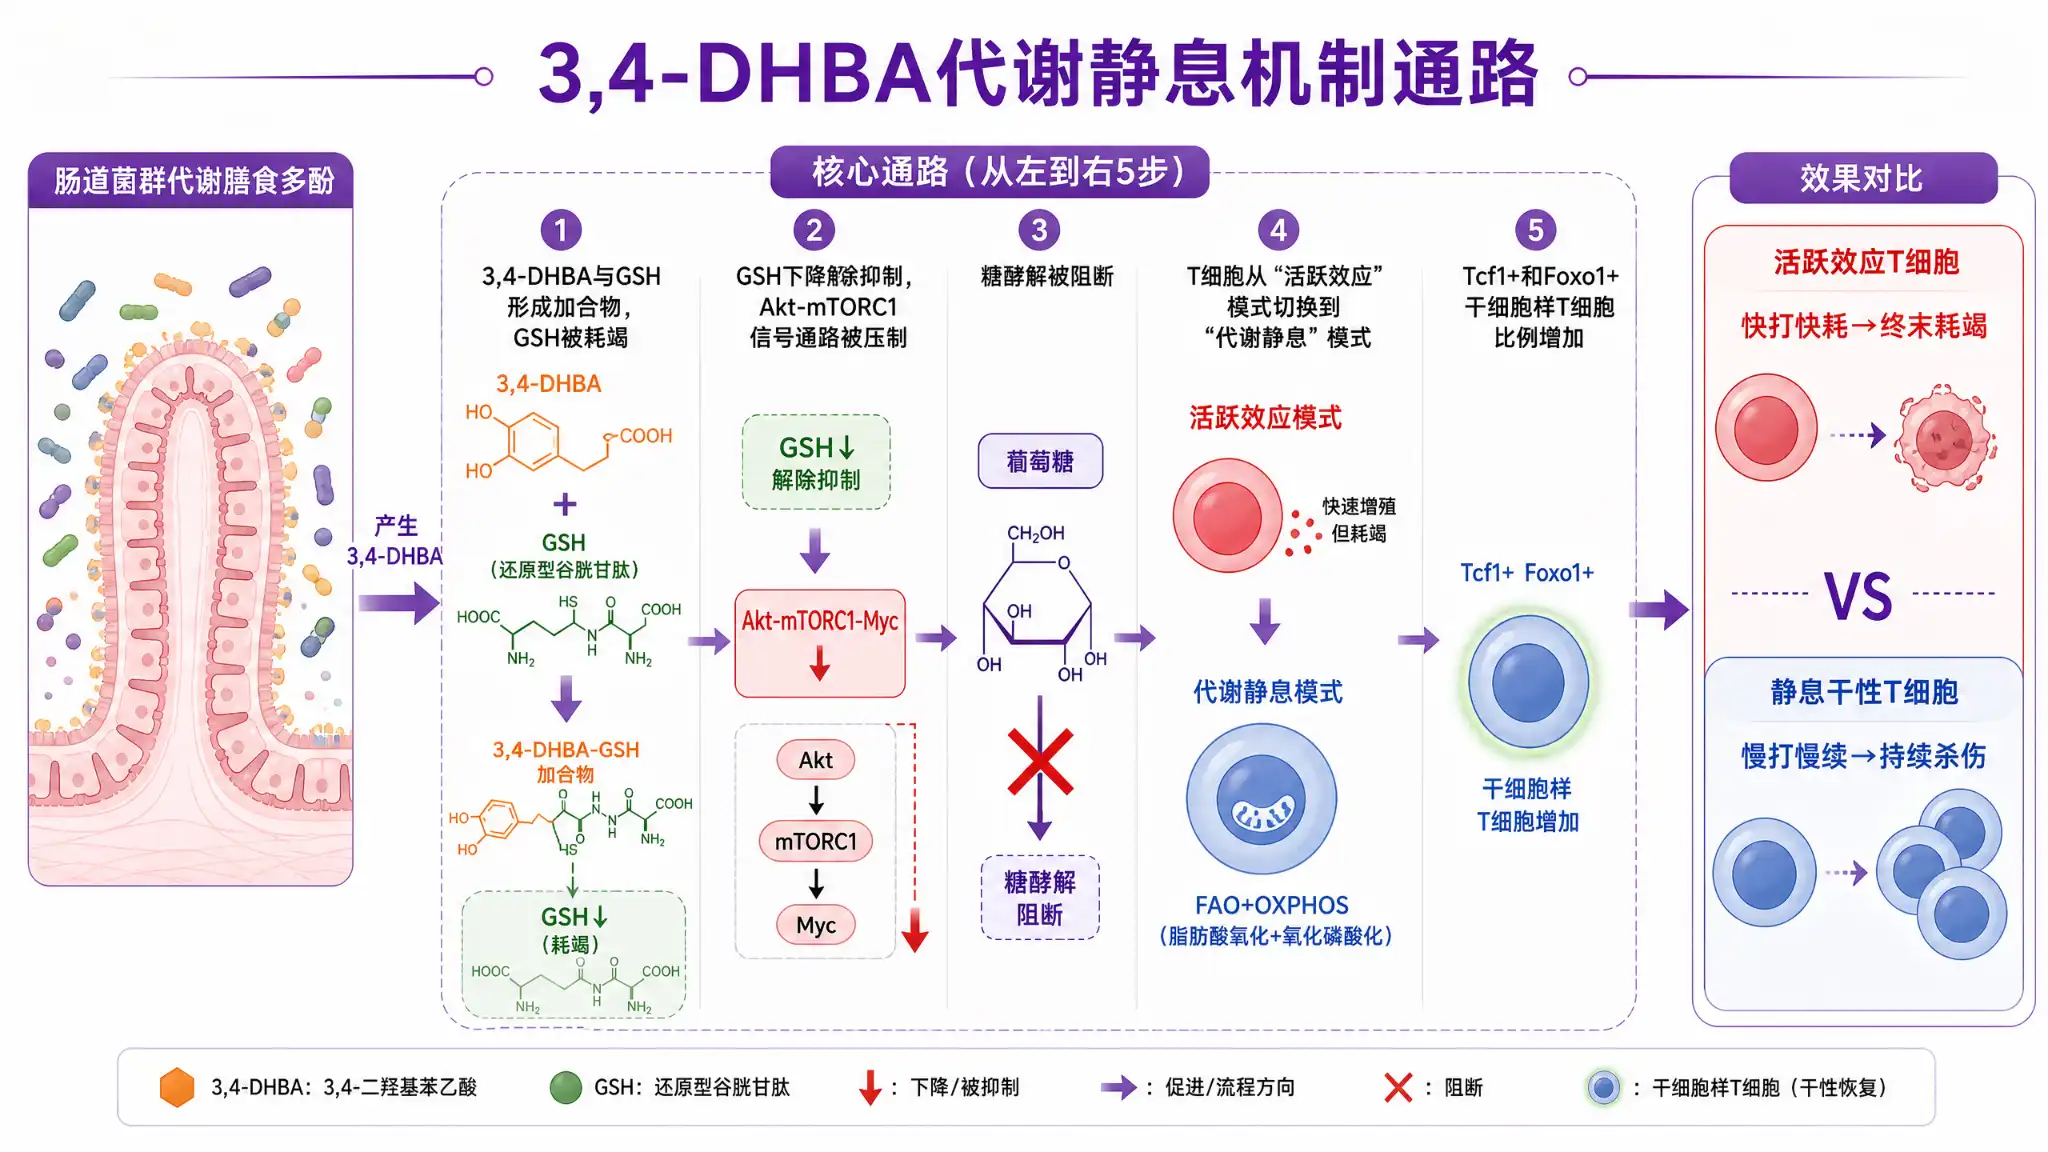
但"静息比活跃好"不是一个普适结论,它有明确的适用窗口。3,4-DHBA的作用时机在T细胞进入肿瘤微环境之前:先通过代谢重编程储备干性,让T细胞携带更多自我更新能力进入战场。一旦进入效应阶段——T细胞识别肿瘤抗原、执行杀伤——它仍需要切换回糖酵解来支持快速增殖和细胞毒功能。如果把"代谢静息"当成所有阶段都应该追求的目标,在效应阶段反而会削弱杀伤力。正确的理解是:3,4-DHBA管的是"出征前的蓄力",不是"战斗中的减速"。
需要强调的是,这个机制目前基于体外细胞实验和小鼠模型数据,人体T细胞的代谢异质性、肿瘤微环境的免疫抑制网络复杂性,都可能影响3,4-DHBA在临床场景下的实际效果。从"小鼠T细胞"到"人体T细胞"之间,仍然存在不可忽视的转化鸿沟。
3,4-DHBA在体外表现亮眼,但作为一个天然小分子代谢物,它的成药性几乎踩中了所有"不宜成药"的红线:口服生物利用度低、体内半衰期短、在胃肠道中易被进一步代谢降解。直接口服游离3,4-DHBA,到达体循环的有效浓度远不足以驱动T细胞代谢重编程。
研究团队的解决方案是前药纳米乳液策略。将3,4-DHBA改造为前药分子,再制备成口服纳米乳液制剂。药代动力学数据显示:前药纳米乳液口服后,血浆半衰期延长至4.1小时,生物利用度较游离药物提升9.72倍[1]。
纳米乳液递送体系与冰合更熟悉的LNP(脂质纳米颗粒)体系有本质区别。LNP适合递送核酸(mRNA、siRNA、circRNA),通过可电离脂质与核酸静电复合后内吞递送;纳米乳液适合递送疏水性小分子或前药,通过油相-表面活性剂界面增溶后口服吸收。两者适配的payload类型不同,递送途径也不同(注射vs口服),但在脂质材料层面有交集——纳米乳液的制备同样需要表面活性剂、油相载体和PEG组分。
体内抗肿瘤实验是这项研究的验证终点。口服前药联合抗PD-1抗体,在多种小鼠肿瘤模型中显著扩增了肿瘤微环境及引流淋巴结内的抗原特异性干细胞样CD8+ T细胞,并克服了免疫耐药性[1]。公开摘要以定性描述为主,具体的肿瘤生长抑制率、生存期延长数据和干细胞样T细胞扩增倍数需读原文全文获取。这意味着3,4-DHBA不仅在小鼠T细胞层面恢复了干性,而且在活体肿瘤模型中转化为了可测量的抗肿瘤免疫增强——至少在小鼠身上,"代谢静息→干性恢复→克服PD-1耐药"这条链路跑通了。
但需要审慎看待几个局限。第一,"多种小鼠肿瘤模型"的具体种类和定量数据(肿瘤生长抑制率、生存期延长等)在公开摘要中未完整披露,需要读原文全文获取。第二,前药纳米乳液的具体配方组成(表面活性剂种类、油相类型、PEG组分比例)同样未公开,难以评估其CMC(化学制造和控制)可行性和规模化生产难度。第三,小鼠肿瘤模型与人体肿瘤的免疫微环境差异巨大——小鼠皮下移植瘤对免疫调控的反应往往优于人体原发肿瘤,这一点在PD-1自身的历史中已经反复验证过。
3,4-DHBA的研究并非孤例。就在同一周,2026年8月17日Cancer Cell发表了南京医科大学陈云与东南大学滕皋军团队的配套研究,从完全不同的角度指向了同一个结论[6]。
该团队发现,瘤内蜡样芽孢杆菌(Bacillus cereus)能够优先定植于肝癌组织中的干细胞样淋巴样微环境(SLN)区域。蜡样芽孢杆菌分泌的PI-PLC(磷脂酰肌醇特异性磷脂酶C)切割内皮细胞表面的CD55,激活补体-Ca²⁺-钙蛋白酶信号,触发内皮细胞释放IL-33。IL-33信号进一步驱动ILC2(2型固有淋巴细胞)的谷氨酰胺代谢重编程——降低α-酮戊二酸/琥珀酸比率、增加H3K4me3修饰——上调ILC2的CD70和淋巴毒素表达,最终维持Tpex细胞干性并促进SLN形成[6]。PI-PLC与抗PD-L1联合治疗在肝癌小鼠模型中显示出协同抗肿瘤效果。
如果觉得这条机制链太长,可以简化为一句话:瘤内细菌通过重塑微环境"土壤",维持了T细胞"种子"的干性。这与3,4-DHBA的研究形成互补——
两篇论文共同指向一个判断:T细胞干性是克服PD-1耐药的关键节点,肠道菌群/瘤内菌通过不同路径——一个从内部代谢重编程,一个从外部微环境重塑——维持了这个节点。
这个判断还有更广泛的支撑。2026年7月Immunity发表的综述系统梳理了胆汁酸如何连接宿主代谢、肠道微生物组与肿瘤免疫——结合型初级胆汁酸蓄积伴随CD8+ T细胞氧化应激和耗竭,脱氧胆酸通过PMCA-NFAT2轴削弱T细胞钙信号与效应功能[7](建议核实原文)。同一时期的Nature Materials报道了肠道菌群-胆汁酸-库普弗细胞代谢免疫轴如何调控纳米药物的肿瘤递送效率:甲硝唑靶向清除厌氧菌后,脂质体阿霉素的表观消除半衰期从32.92小时延长至70.84小时[8](具体数据建议核实原文)。复旦大学2026年8月Cell发表的另一项研究则从肠道-免疫轴的另一个维度切入:非脑穿透性5-HT2AR激动剂通过激活肠胶质细胞促进CXCL10和IL-18表达,增强CD8+ T细胞浸润,提升PD-1阻断疗法疗效[9]——虽然这条路径聚焦的是T细胞浸润而非干性维持,但它进一步说明肠道-免疫轴对PD-1疗效的影响远比此前认识的更广泛。
这些研究从不同角度拼出一个正在成形的图景:肠道菌群-代谢物-免疫-肿瘤,不是四条平行线,而是一张正在被快速绘制出来的调控网络。3,4-DHBA的研究在这张网络中的独特价值在于:它不仅发现了调控节点,还提供了把调控节点变成口服药物的工程化路径。
回到开篇的问题:PD-1耐药怎么办?
2026年ASCO上展示的多条产业路线——PD-1×VEGF双抗(依沃西单抗)、PD-1/IL-2α融合蛋白(IBI363,信达生物与武田合作,含里程碑付款)、以及多靶点三抗等——逻辑都是"在激活轴上叠加信号"。这些路线有各自的临床验证进度和合理性,但它们共享一个隐含假设:T细胞不够活跃,所以需要更多激活信号。
3,4-DHBA的研究提出了一个正交的补充维度:也许问题不在于T细胞"不够活跃",而在于T细胞"不够持久"。如果干性丢失导致T细胞打完一仗就耗竭,那么叠加再多的激活信号也只是让更多T细胞更快地走向终末耗竭——相当于往一个漏水的池子里加更多的水。3,4-DHBA做的事情不是加水,而是修池子——通过代谢重编程恢复T细胞的自我更新能力,让池子不漏。
这个范式转向的适用边界需要厘清。3,4-DHBA不是在所有阶段都让T细胞"静息"——效应阶段的T细胞仍需要活跃的糖酵解来执行杀伤功能。3,4-DHBA的作用更像是"在启动前储备干性"——让进入肿瘤微环境的T细胞携带更多干性储备,从而在面对免疫抑制压力时不会迅速耗竭。这与"全程静息"是不同的,更接近"先蓄力再发力"的节奏控制。
临床转化的路径上,3,4-DHBA口服纳米药仍处于临床前阶段。从小鼠模型到人体临床,需要跨越剂量换算、人体药代动力学验证、安全性评估、联合用药方案设计等多重门槛。前药纳米乳液的具体配方细节尚未公开,CMC可行性和规模化生产难度有待评估。但作为概念验证,这项研究已经回答了一个关键问题:肠道菌群代谢物可以通过口服纳米递送变成有药理意义的免疫调控剂——这为"菌群代谢物成药"打开了工程化路径。
尽管3,4-DHBA前药的具体配方尚未公开,但纳米乳液制剂的开发通常需要系统筛选油相、表面活性剂和PEG组分的组合,前药分子的合成也需要化学偶联试剂。这些试剂的选择直接影响最终制剂的药代动力学和稳定性。冰合试剂可提供纳米递送体系构建相关脂质材料及化学偶联试剂的定制服务,如需支持可联系定制中心评估供货。
参考文献
[1] Oral nano-delivery of a gut microbial metabolite enhances T cell stemness for cancer immunotherapy. Nat Nanotechnol. 2026 Aug 10. doi:10.1038/s41565-026-02235-9.
[2] Im SJ, et al. Defining CD8+ T cells that provide restorative proliferative potential after PD-1 blockade. Nature. 2016;537(7620):417-421. PMID:27642140.; Utzschneider DT, et al. T cell factor 1-expressing memory CD8+ T cells augment the checkpoint blockade therapeutic response. Immunity. 2016;44(4):952-962.
[3] SATB1 maintains quiescence of TPRO and memory CD8+ T cells. Nat Immunol. 2025. doi:10.1038/s41590-025-02257-w.
[4] Butyrate drives CD8+ T cell stemness via FOXO1. Immunity. 2025. doi:10.1016/j.immuni.2025.10.004.
[5] 肠道菌群代谢膳食多酚产生3,4-DHBA的代谢路径. 据多篇综述文献整理.
[6] Intratumoral Bacillus cereus orchestrates stem-like lymphoid niches to potentiate immunotherapy response in hepatocellular carcinoma. Cancer Cell. 2026 Aug 17. doi:10.1016/j.ccell.2026.07.016.
[7] Bile acids link host metabolism, gut microbiome and tumour immunity. Immunity. 2026 Jul 29. doi:10.1016/j.immuni.2026.07.003.
[8] Gut microbiota-bile acid-Kupffer cell axis modulates nanodrug delivery. Nat Mater. 2026 Jul 31. doi:10.1038/s41563-026-02690-8.
[9] 5-HT2AR agonist activates enteric glial cells to enhance CD8+ T cell infiltration and PD-1 blockade efficacy. Cell. 2026 Aug 4. doi:10.1016/j.cell.2026.07.028.
本文为行业分析,所述数据均来自公开学术文献与监管机构公开记录,仅供科研学习参考,不构成商业应用承诺。
文中试剂仅限实验室研究使用,不用于人体临床、诊断或治疗。部分参考文献因全文获取受限,建议读者查阅原文核实。
「冰合试剂」为单体(重庆)生物科技有限公司注册商标,本文由单体(重庆)生物科技有限公司发布。
冰合试剂 — 纳米递送与免疫调控试剂专业供应商
邮箱 danticq@163.com
电话 023-68279488 | 19923948071 | 19112026971
地址 重庆市江北区盘溪路422号3幢
加关注
Copyright 2025 冰合试剂 All Rights Reserved.
渝ICP备2023007920号-3
 渝公网安备 50010502504579号
 磷脂系列